
Fra labben: proteinbremser ved Netherton og sviktende hudbarriere
KLK5, LEKTI og lokal levering forklart med kjente strukturer, modellkontroller og transportdata. Hvor kan proteinteknologi bidra ved barriereproblemer?
 Jon Gottfred AndersenStyreleder og hudlege
Fra labben · mulighetsstudie og teknologidemonstrasjon. Egne beregninger, publiserte referanser og syntetiske eksempler er merket hver for seg. Vi har ikke gjennomført biologiske forsøk eller pasientstudier.
Huden er lett å komme til, men vanskelig å levere proteiner gjennom. Samtidig finnes det interessante mål nær overflaten: enzymer som regulerer avskalling, proteiner som bidrar til barrieren, og mikroorganismer i hudmiljøet. Netherton syndrom gir oss et særlig konkret utgangspunkt for å undersøke hvordan et proteinforslag kan knyttes til et definert biologisk problem.
En balanse mellom fornyelse og beskyttelse
Hudens ytterste lag fornyes kontinuerlig. Proteaser, enzymer som klipper andre proteiner, inngår i denne reguleringen. De må være aktive nok til å bidra til normal avskalling, men ikke så aktive at viktige forbindelser i barrieren brytes ned på feil sted eller tidspunkt.
Ved Netherton er funksjonen til proteasehemmeren LEKTI forstyrret. Primærarbeid med LEKTI-fragmenter beskriver hvordan ulike deler påvirker kallikreiner, blant annet KLK5, og hvordan pH påvirker samspillet. Dette gir et mer avgrenset spørsmål enn et generelt ønske om å dempe inflammasjon: kan en bestemt inhibitor bidra til en bedre regulert proteaseaktivitet i riktig del av huden?
«Mer hemming» er ikke automatisk et bedre designmål. Et forslag må vurderes opp mot normal vevsfornyelse, andre proteaser og miljøet der det skal virke. Det gjør lokal pH, tilgjengelighet og varighet til biologiske designbetingelser, ikke bare detaljer som kommer etter at en pen struktur er laget.
Flere proteinprinsipper kan undersøke samme mål
En mulighet er å ta utgangspunkt i kroppens egne inhibitorer eller deler av dem. En annen er et mindre, stabilisert peptid med en egnet kontaktflate. En tredje er et antistoff eller antistofffragment. Disse formatene kan ha ulike fordeler og problemer når det gjelder tilgang, stabilitet og hvordan de påvirker enzymet.
Mah og kollegers LEKTI-inspirerte arbeid beskriver et syklisk inhibitorpeptid med prekliniske resultater, blant annet en forbedring i et elektrisk mål på barriereintegritet i keratinocytter fra én Netherton-pasient. Det er et interessant funksjonsfunn i en modell, ikke dokumentasjon på levering eller behandlingseffekt hos pasienter.
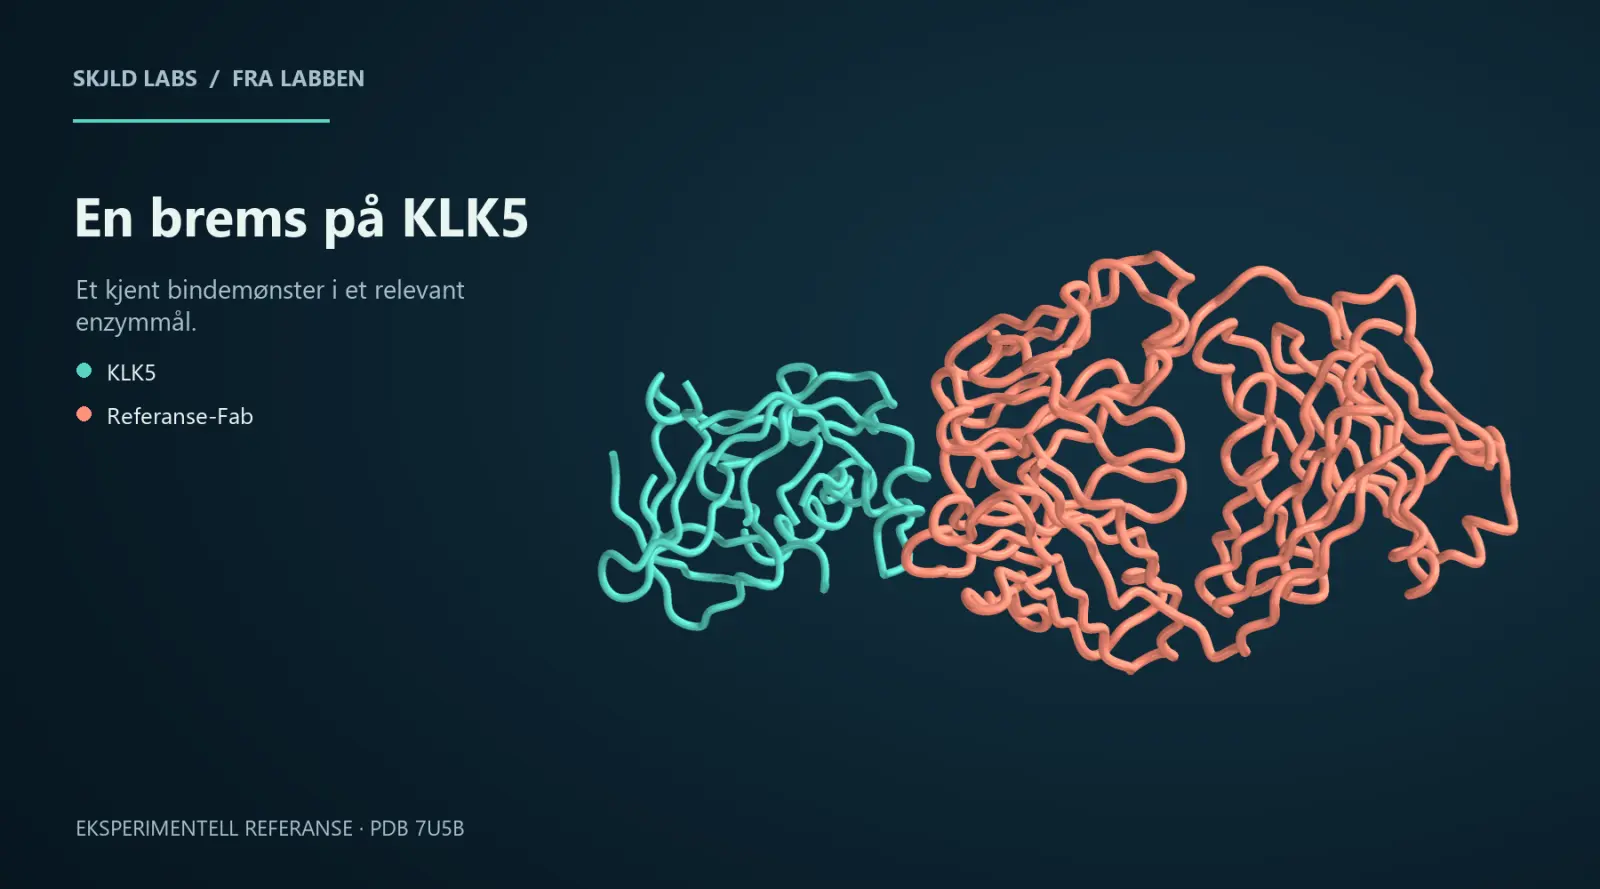
Arbeidet bak KLK5/KLK7-antistoffene viser et annet prinsipp. Strukturen 7U5B inneholder et Fab-fragment som binder utenfor enzymets aktive sete. Et Fab er den antigenbindende delen av et antistoff. Eksemplet illustrerer at hemming også kan oppstå gjennom påvirkning av enzymets form eller dynamikk; alle inhibitorer trenger ikke fylle den samme lommen.
Hvorfor vi begynte med en kjent binder
Før en modell brukes til å prioritere helt nye forslag, er det nyttig å undersøke om den gjenskaper en kjent kontakt. Vi brukte det eksperimentelle KLK5/Fab-komplekset som en slik kontroll og laget fire Chai-prediksjoner. Dermed hadde vi et referansepunkt som ikke var valgt bare fordi modellen likte sitt eget nye forslag.
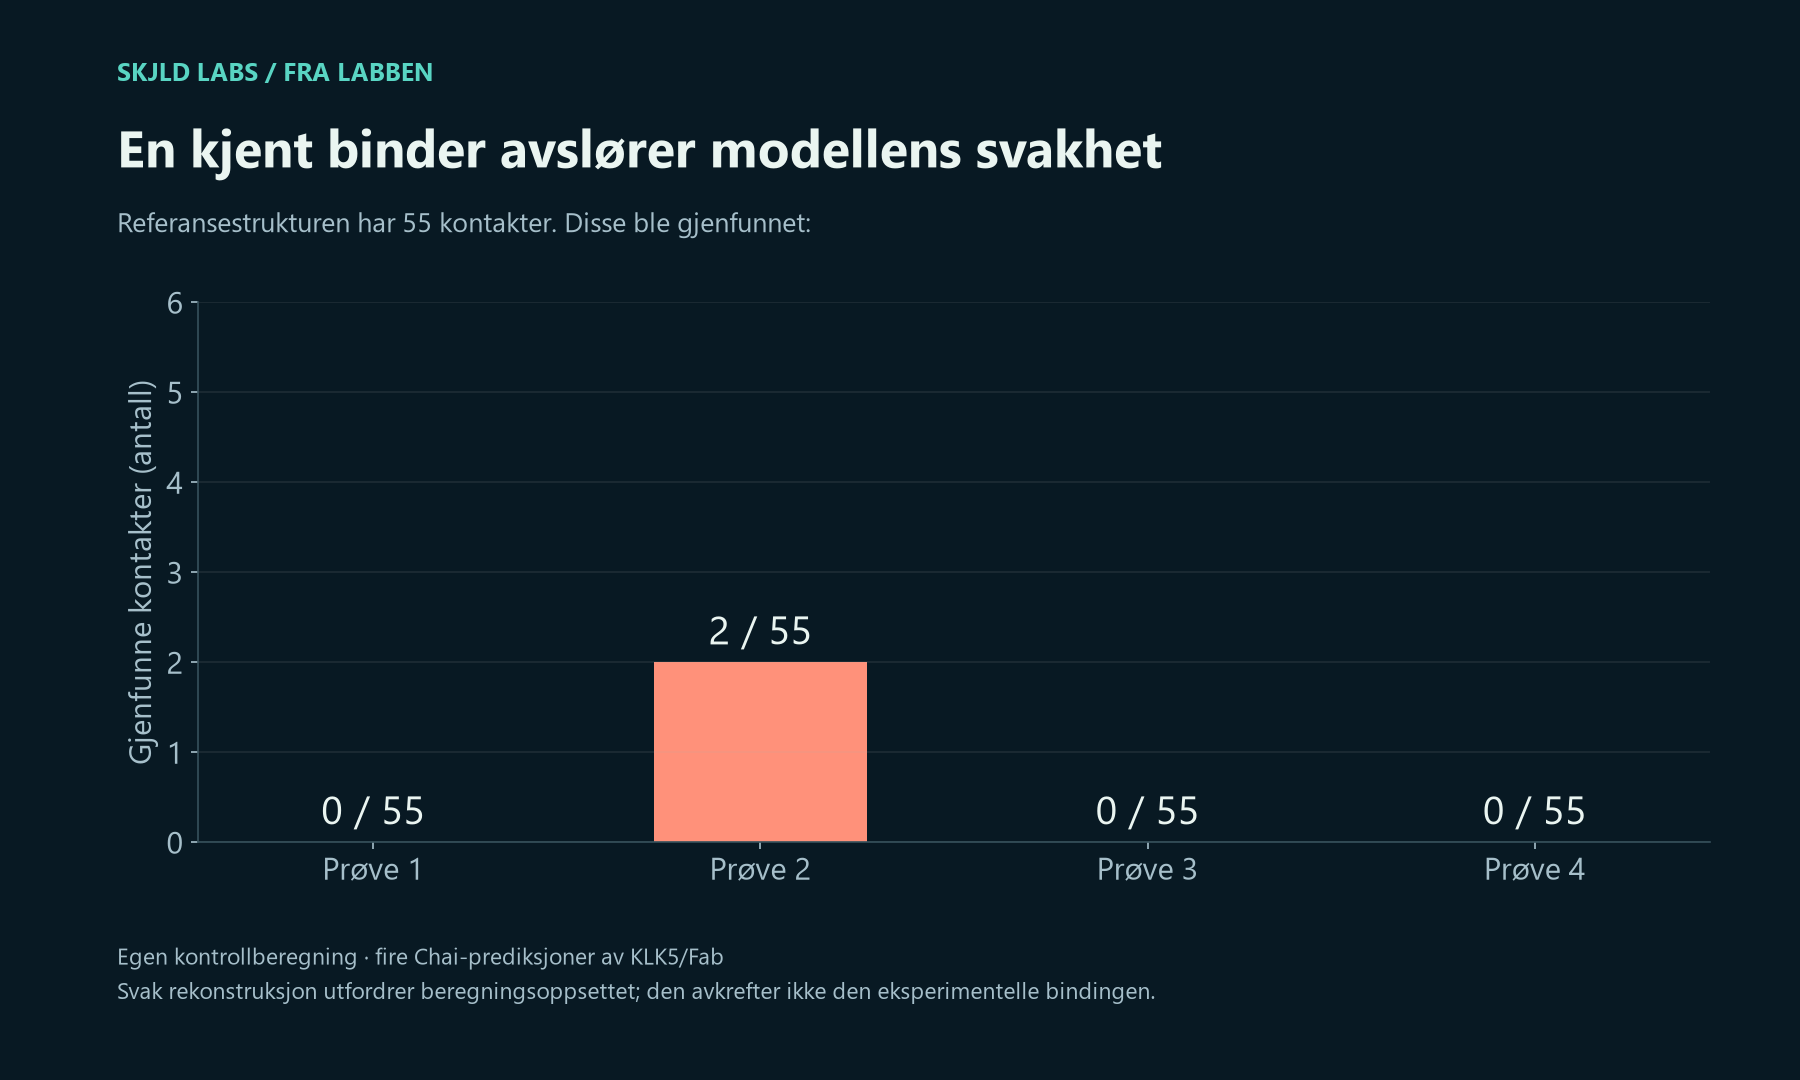
Kontrollen ga et svakt resultat: tre prøver gjenskapte ingen av de 55 referansekontaktene, og én gjenskapte to. Grafen er derfor først og fremst et funn om beregningsoppsettet. Den avkrefter ikke en binding som allerede er undersøkt eksperimentelt. Det ville være en feil å bruke modellens usikkerhet som et argument mot de faktiske referansedataene.
Denne kontrollen endrer hva vi bør gjøre videre. I stedet for å rangere en stor mengde nye KLK5-forslag ut fra samme oppsett, må vi forstå hvorfor den kjente interaksjonen ble dårlig gjenskapt. Inngangsdata, antistoffformat, målstruktur og hvilke deler av komplekset som faktisk sammenlignes, kan alle være relevante spørsmål. Vi har ikke fastslått én årsak.
Et protein på huden er ikke nødvendigvis et protein ved målet
For å gjøre leveringsproblemet forståelig laget vi en enkel transportmodell. Modellen følger fritt og bundet materiale gjennom et homogent sjikt. Materiale tilføres ved overflaten i en begrenset modellperiode; deretter opphører tilførselen. Diffusjon, binding, frigjøring og tap bestemmer fordelingen i modellen.
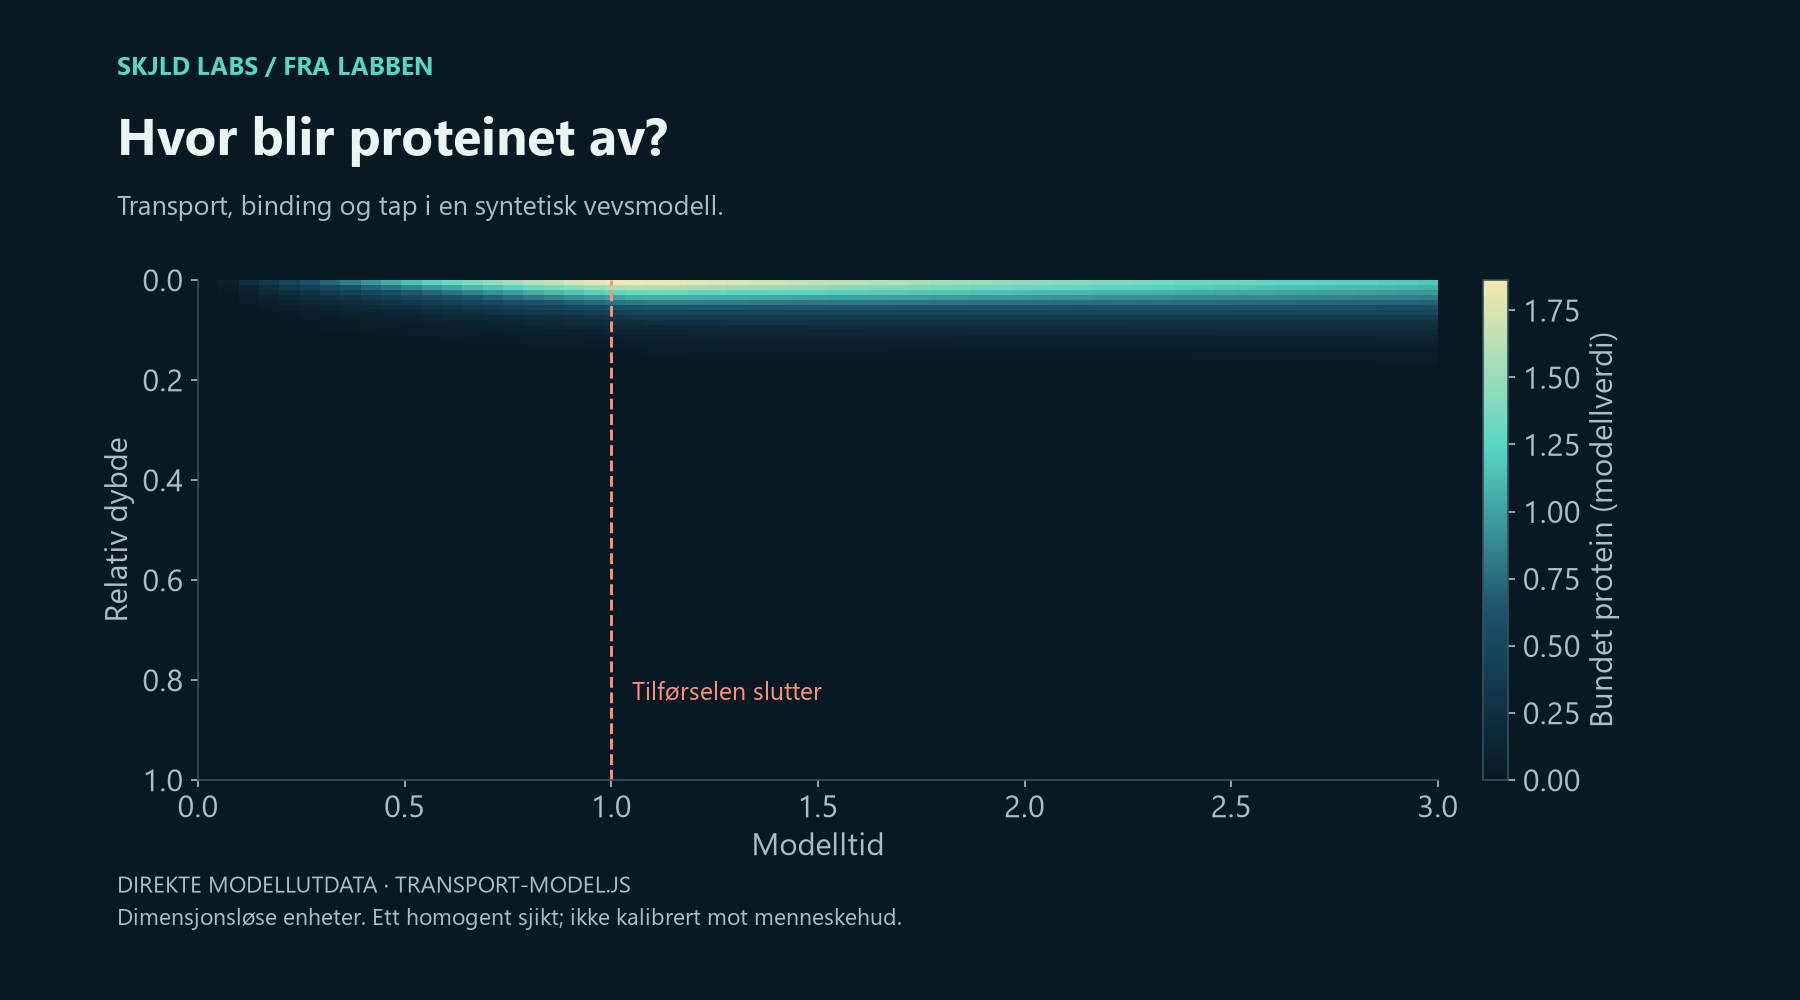
I varmekartet går tiden horisontalt og relativ dybde vertikalt. Lyse områder angir mer bundet materiale innenfor modellens enheter. Det er ikke en målt konsentrasjon i hud. Sjiktet har ikke noe eksplisitt hornlag, hårfollikler, blodkar eller immunceller, og parametrene er ikke kalibrert til Netherton eller en bestemt formulering.
Det enkle oppsettet har likevel en fordel: vi kan endre én forutsetning og følge konsekvensen. Det gjør det lettere å se hvilke ulike mekanismer som kan gi et lignende sluttresultat. En modell som demonstrerer en slik sammenheng er nyttig for spørsmål og planlegging, selv om den ikke kan forutsi en dose eller en klinisk effekt.
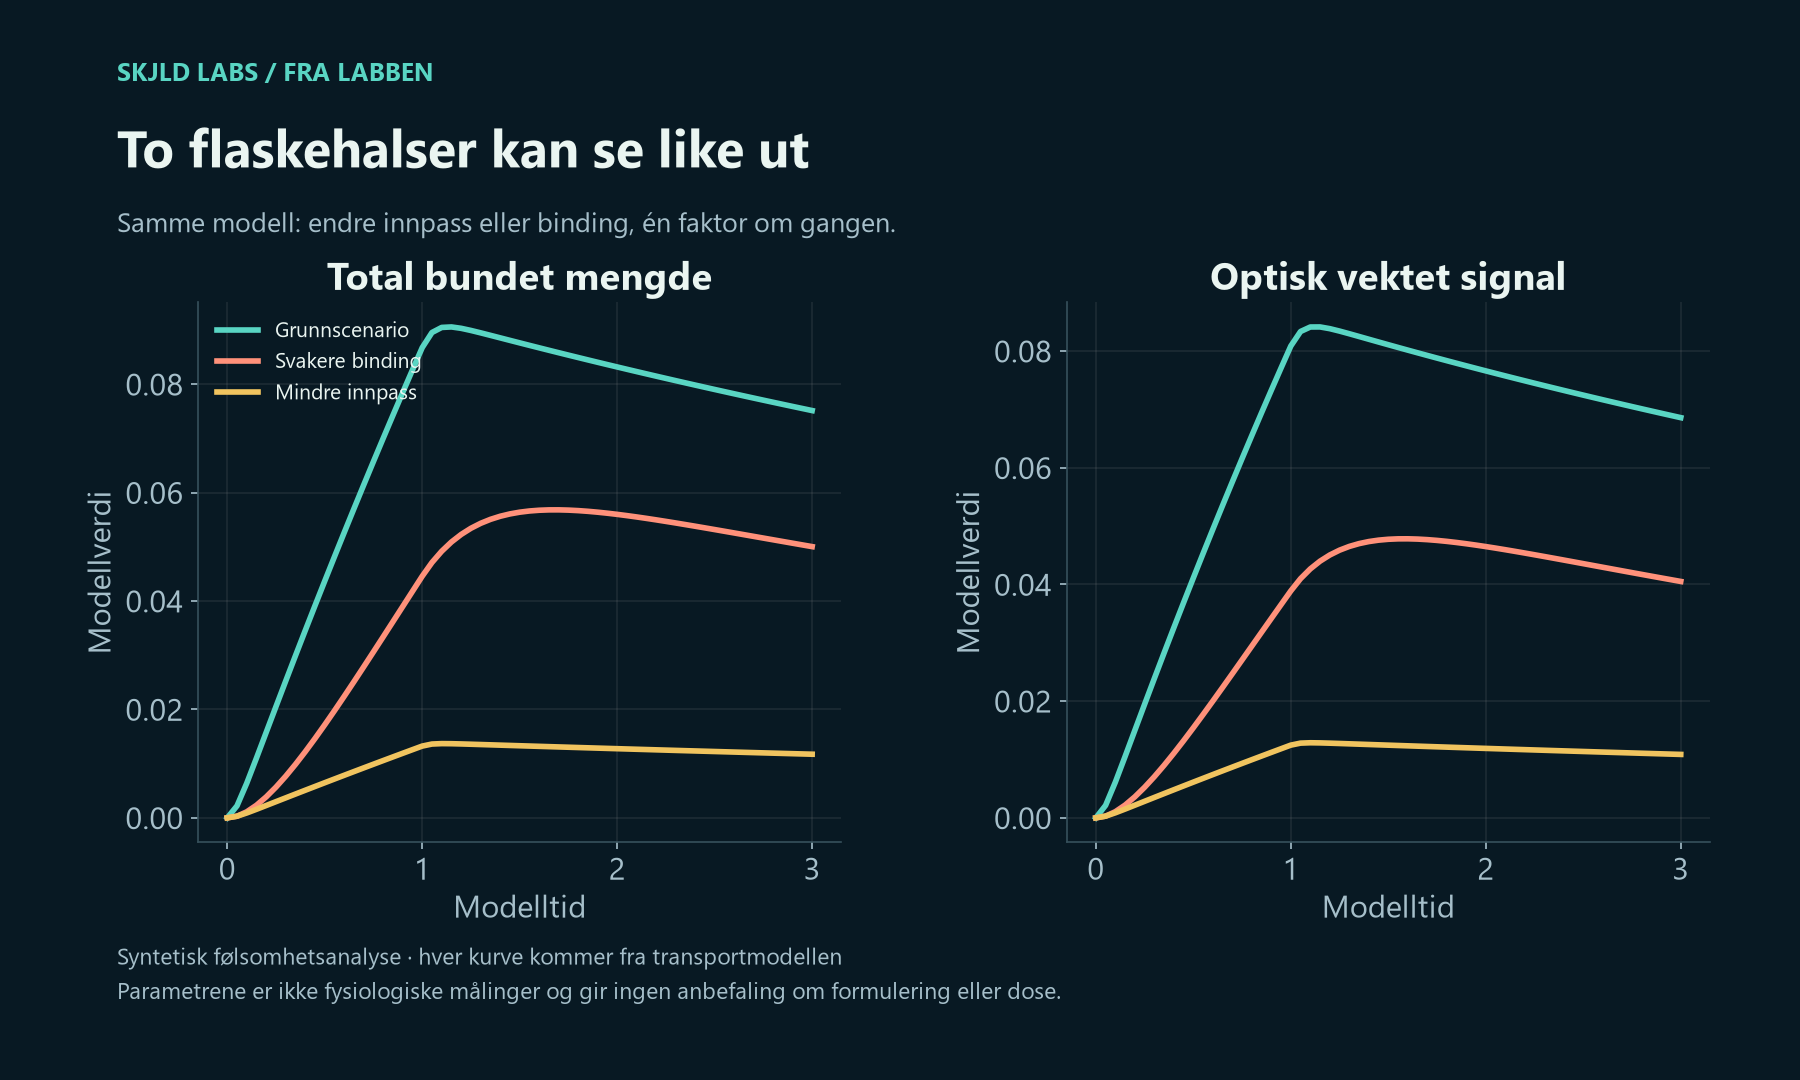
Her sammenlignes grunnscenarioet med svakere binding og mindre innpass ved overflaten. Begge endringene kan senke den bundne mengden og det optisk vektede signalet. En svak måling alene avslører derfor ikke om binderen var dårlig, om for lite materiale kom frem, eller om optikken skjulte det som var der.
Overflateenzymer: et annet problem krever en annen referanse
Enzymer rettet mot bakterier ved atopisk dermatitt er et nærliggende, men biologisk forskjellig spor. Her er oppgaven knyttet til mikroorganismer i hudmiljøet, ikke til å erstatte LEKTIs regulering. Kandidater fra de to sporene kan derfor ikke rangeres på én felles skala for «hudproteiner».
En kontrollert studie av SA.100 rapporterte ikke den ønskede korttidsforbedringen sammenlignet med vehikkel. Et annet enzymarbeid rapporterte forbedring i en åpen human studie. Forskjellige produkter, studiedesign og kontrollbetingelser gjør at dette ikke er to direkte sammenlignbare effektanslag. Vi beholder begge i kildegrunnlaget.
Et tydeligere kandidatspørsmål
| Kandidatens oppgave | Hva beregningene kan bidra med | Hva som må undersøkes separat |
|---|---|---|
| Regulere KLK5 | Beskrive kontaktflate og utfordre et strukturforslag | Faktisk enzymhemming og selektivitet |
| Nå riktig hudmiljø | Synliggjøre transportantakelser og følsomhet | Tilgang, stabilitet og lokal varighet |
| Bevare barrieren | Knytte kandidaten til en begrunnet mekanisme | Relevant funksjon og normal vevsfornyelse |
For Netherton er potensialet i første omgang å gjøre inhibitorvalget mer presist: hvilken proteasefunksjon ønsker vi å regulere, med hvilket proteinformat og i hvilket hudmiljø? Kjente referanser gir noe å sammenligne med. Beregninger kan bidra til å beskrive kontaktflater og avdekke svake antakelser, mens funksjon og vevstilgang må undersøkes med andre typer data.
Det er derfor ikke et tilbakeskritt at den kjente KLK5-kontrollen fungerte dårlig i modellen. Den hindrer oss i å gi nye kandidater større troverdighet enn oppsettet fortjener. En kortere vei til et godt biologisk prosjekt kan nettopp bestå i å oppdage slike begrensninger før man produserer mange nye proteiner.
Finn og sammenlign de 23 kandidatkortene →
Les også: styrken i KI for proteindesign og medisin.
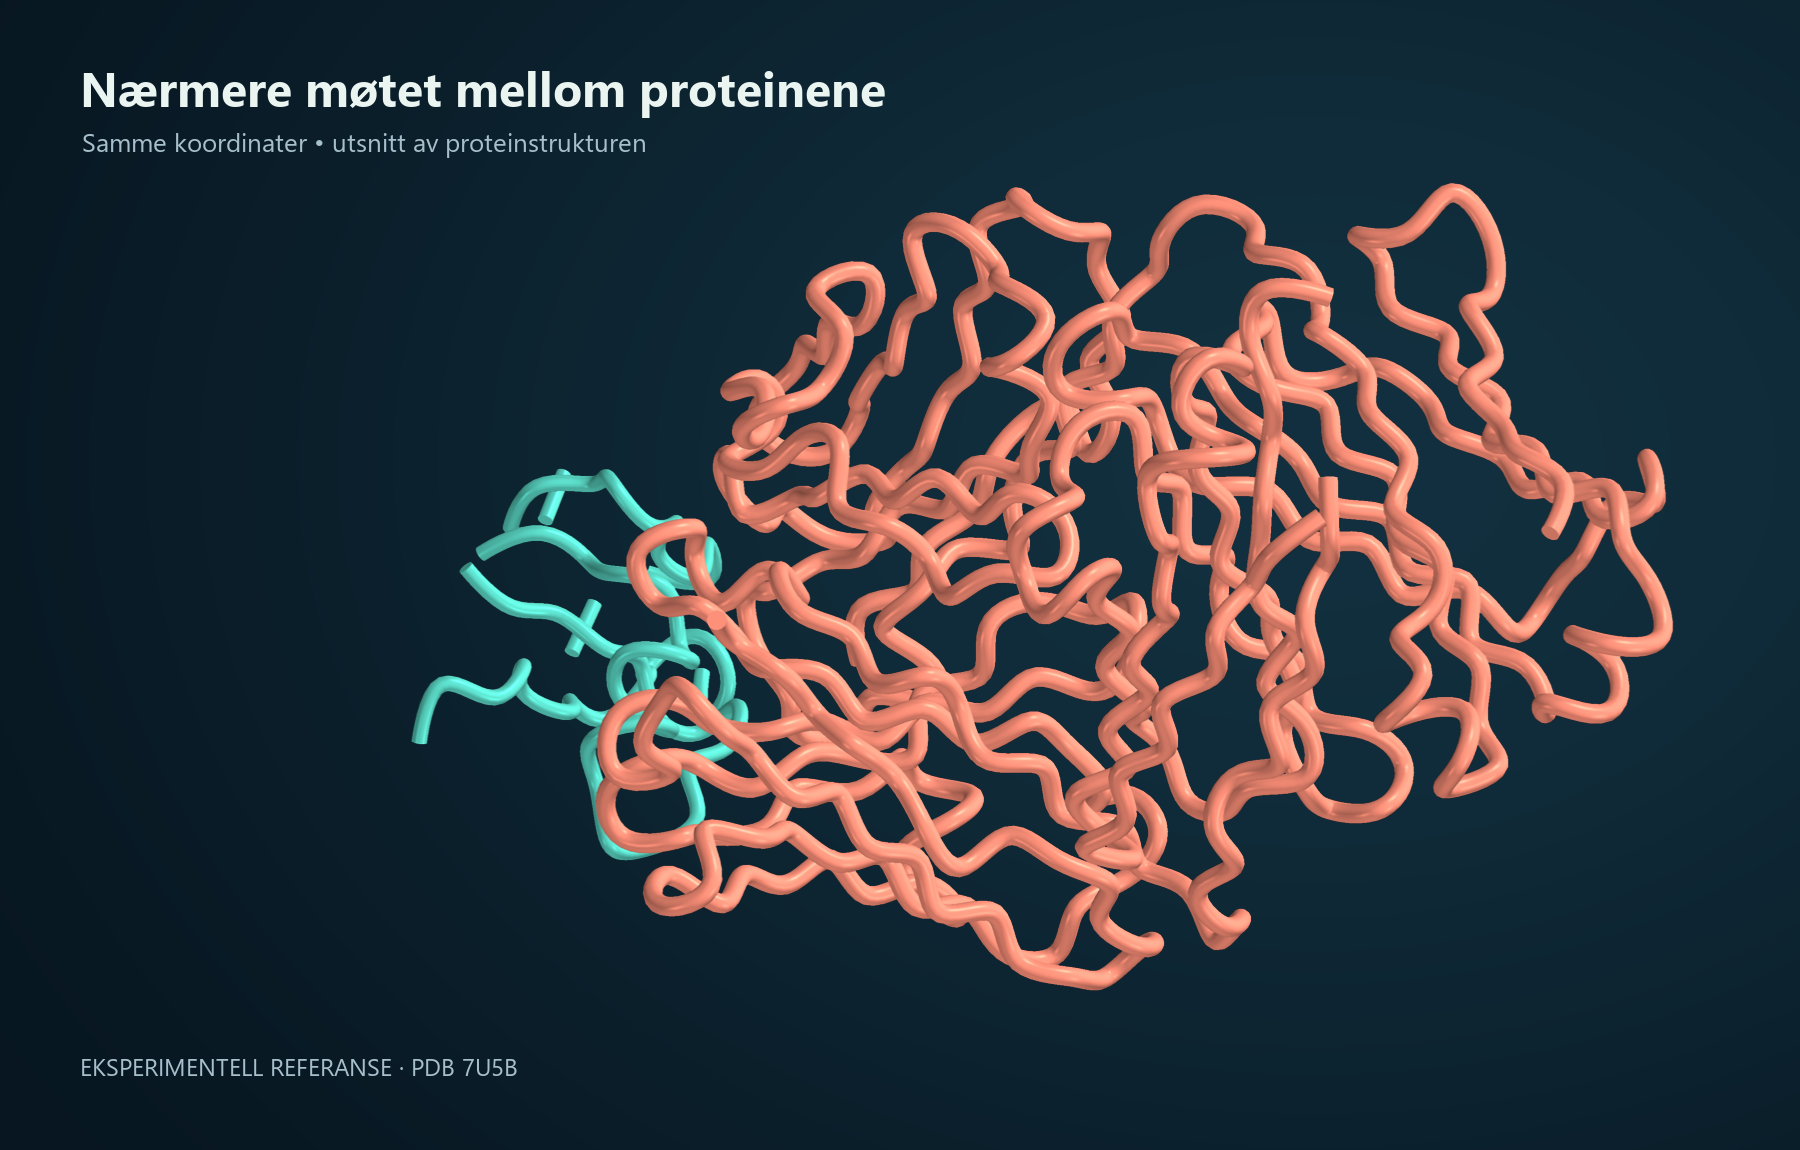
Om hovedbildet: PDB 7U5B: KLK5 i turkis og det eksperimentelt undersøkte Fab-fragmentet i korall. Dette er en kjent referanse, ikke vårt eget nye kandidatprotein.
Kilder og etterprøving
Primærkilder er lenket ved påstandene de støtter. Figurgrunnlaget med kode og data, kontrollsummene og den fulle visnings- og dokumentasjonspakken kan lastes ned. De opprinnelige tolv artikkelversjonene er bevart som et datert arkiv.
Tekniske presiseringer om beregningene og figurene
Strukturfigurene følger Cα-posisjonene langs proteinkjeden. Linjene er glattet for visning, og manglende segmenter fylles ikke inn. Alle kjeder i et kompleks får samme rotasjon og forskyvning; binderen flyttes ikke separat for å passe bedre. Nærbilder viser binderen og observerte målkoordinater innen 18 Å. Fargene beskriver proteinroller, ikke aktivitet eller målt affinitet.
RFD4-Proteina ble brukt gjennom den dokumenterte Diffusers-vekten. Andre modeller var ESMFold v1, Boltz 2.2.1 og chai-lab 0.6.1. Boltz-affinitetshodet ble ikke brukt. RFD4- og ESMFold-kjøringer finnes for egne designspor; de litteraturbaserte sykdomssporene har ikke fått egne nye kandidatsekvenser.
De syntetiske transport- og kartmodellene har dimensjonsløse parametre. De er ikke kalibrert mot hud, biologisk behandling eller diagnostisk ytelse. Denne samlingen er en redaksjonell videreutvikling av utført arbeid, uten nye proteinprediksjoner eller biologiske forsøk.
Opprinnelige modellantall, kontrolloppsett og vurderingsgrenser.